有酸素代謝による持続的大量再合成
有酸素運動は、細胞質の中にあるミトコンドリアで酸素を使って脂肪や糖を燃やし、ATPを大量に合成する仕組みです。

糖を分解する解糖系は細胞質基質で行われますが、さらに酸素を使った本格的なエネルギー生産(有酸素系)は、細胞内の小器官であるミトコンドリアに引き継がれます。
細胞質
定義:
細胞膜の内側で、細胞核以外の領域のことです。構成:
液体状の「細胞質基質」と、ミトコンドリアやゴルジ体などの「細胞小器官(オルガネラ)」を含みます。Gemini
運動強度が落ち着くか、または持続的な運動(数分以上)に移行すると、細胞質からミトコンドリアへと主代謝が切り替わります。酸素($\text{O}_2$)を利用して糖質や脂肪酸を完全に分解し、莫大な量のATPを生成します。
1. アセチルCoAの生成:ミトコンドリアマトリックスへの流入
解糖系で生じたピルビン酸(※)はミトコンドリア内へ輸送され、ピルビン酸脱水素酵素複合体によってアセチルCoA(コエンザイムエー)に変換されます(脂質代謝の場合はベータ酸化を経てアセチルCoAが生成されます)。
※詳しくはその四
ピルビン酸は無酸素状態では一時的に乳酸へ変化し、有酸素状態まで待機しています。
有酸素状態へ移行すると再び乳酸はビルピン酸へ分解されてミトコンドリアで燃焼され、大量のATPを合成します。
積極的休養がスポーツで選ばれる理由です。
-
- 積極的休養(アクティブリカバリー): 激しい運動の後に完全休止するよりも、軽い有酸素運動(ウォーキングや軽いジョギング)を続ける方が、血流が維持されて乳酸のATP変換(代謝)が格段に早まります。
2. クエン酸回路(TCA回路 / Krebs回路):高エネルギー電子(NADH / FADH₂)の抽出
生成したアセチルCoA($\text{C}_2$)はマトリックス内でクエン酸回路に投入されます。クエン酸回路の目的は、アセチルCoAの炭素骨格を完全に酸化分解し、電子担体($\text{NADH}$ および $\text{FADH}_2$)へ高エネルギー電子を回収させることです。
アセチルCoAがクエン酸回路に組み込まれ、段階的に脱炭酸・酸化反応が進みます。この回路自体で再合成されるGTP(ATP)はわずかですが、大量の**高エネルギー電子保持体(NADH および FADH₂)**が抽出されます。
NADHとFADH₂は、どちらも細胞呼吸(代謝)で働く重要な電子キャリヤー(補酵素)です。解糖系やクエン酸回路で有機物から電子(水素)を奪い、電子伝達系へと運ぶ役割を持っています。
ATP:
塩基にアデニンを持ちます。
GTP:
塩基にグアニンを持ちます。どちらも糖に3つのリン酸基が結合しており、リン酸結合が切れるときに強いエネルギーを放出します。
3. 電子伝達系(呼吸鎖):ミトコンドリア内膜の水素イオン(H⁺)濃度勾配形成
電子伝達系と酸化的光リン酸化への展開
クエン酸回路およびPDH反応で回収されたエネルギーは、還元型補酵素($\text{NADH}$ および $\text{FADH}_2$)に保持された高エネルギー電子の形で、ミトコンドリア内膜の電子伝達系に供給されます。
-
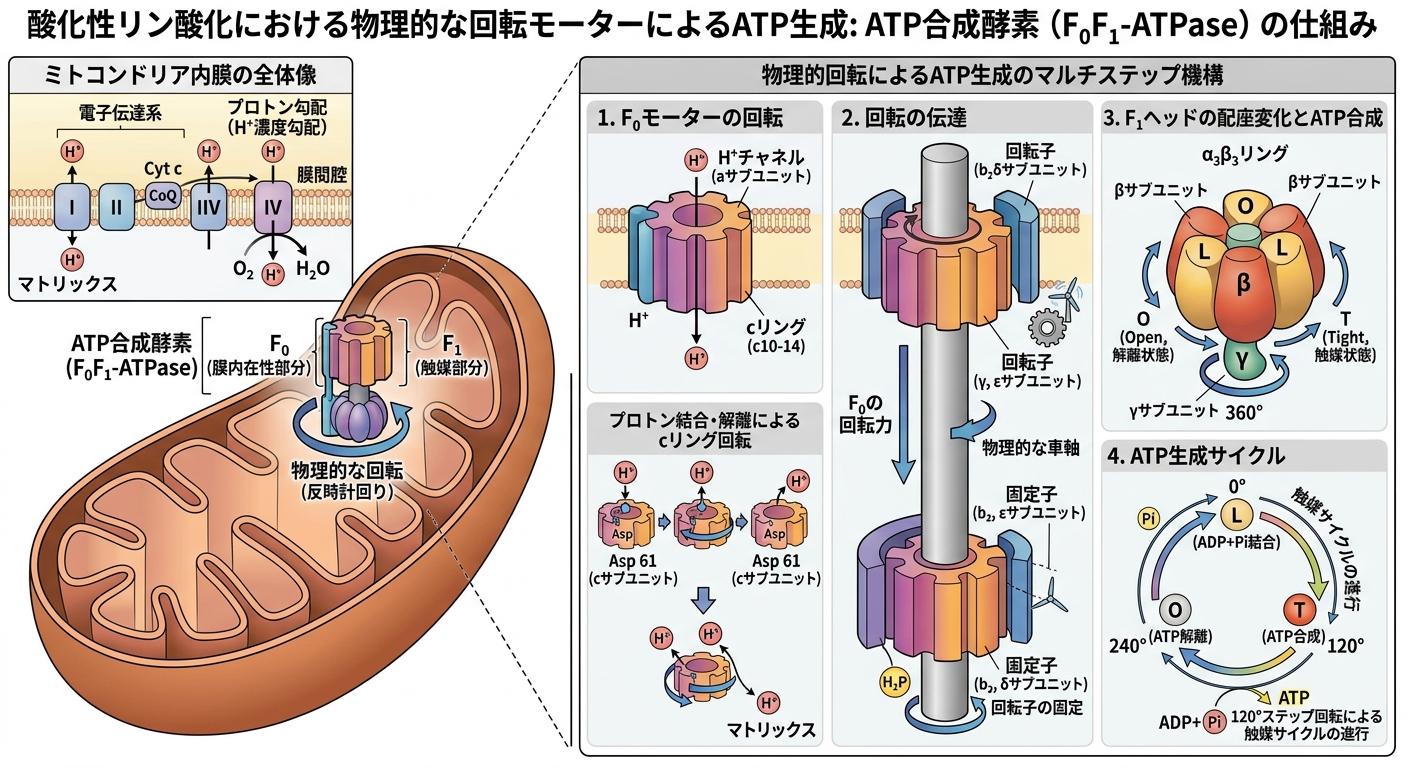
プロトン勾配(PMF)の形成: 電子が複合体I $\rightarrow$ ユビキノン $\rightarrow$ 複合体III $\rightarrow$ シトクロム $c \rightarrow$ 複合体IVと流れる間に、エネルギーを利用して内膜を隔てたプロトン化学電位勾配(膜間腔が極めて陽性・酸性)が構築されます。
-
化学浸透説によるATP合成: 蓄積されたプロトンが $\text{F}_o\text{F}_1$–$\text{ATP}$ 合成酵素を逆流通過することで軸タンパク質が回転し、力学エネルギーが化学エネルギーに置換され、大量の $\text{ATP}$ が産生されます。
-
最終電子受容: 複合体IVで電子を渡された酸素分子($\text{O}_2$)がプロトンと結合し、水($\text{H}_2\text{O}$)となって排出されます。
$\text{NADH}$ や $\text{FADH}_2$ から放出された高エネルギー電子が、ミトコンドリア内膜に並ぶ呼吸鎖複合体(Complex I〜IV)を順次移動します。この電子移動エネルギーを利用して、マトリックス側から膜間腔側へ $\text{H}^+$ が汲み上げられ、**内膜を隔てた電気化学的プロトン勾配(膜電位差)**が形成されます。最終的に電子は酸素($\text{O}_2$)に受け渡されて水($\text{H}_2\text{O}$)となります。
- 化学的要素(濃度勾配): 膜の内外でプロトンの数(pH)に差がある状態です。プロトンが多い側から少ない側へ移動しようとします。
- 電気的要素(電位差): 膜を挟んだ電荷の偏り(プラスとマイナス)によって生じる膜電位です。
- プロトン駆動力(PMF): この2つの要素が合わさり、プロトンを元の場所に戻そうとする大きなエネルギー(プロトン駆動力)を生み出します。
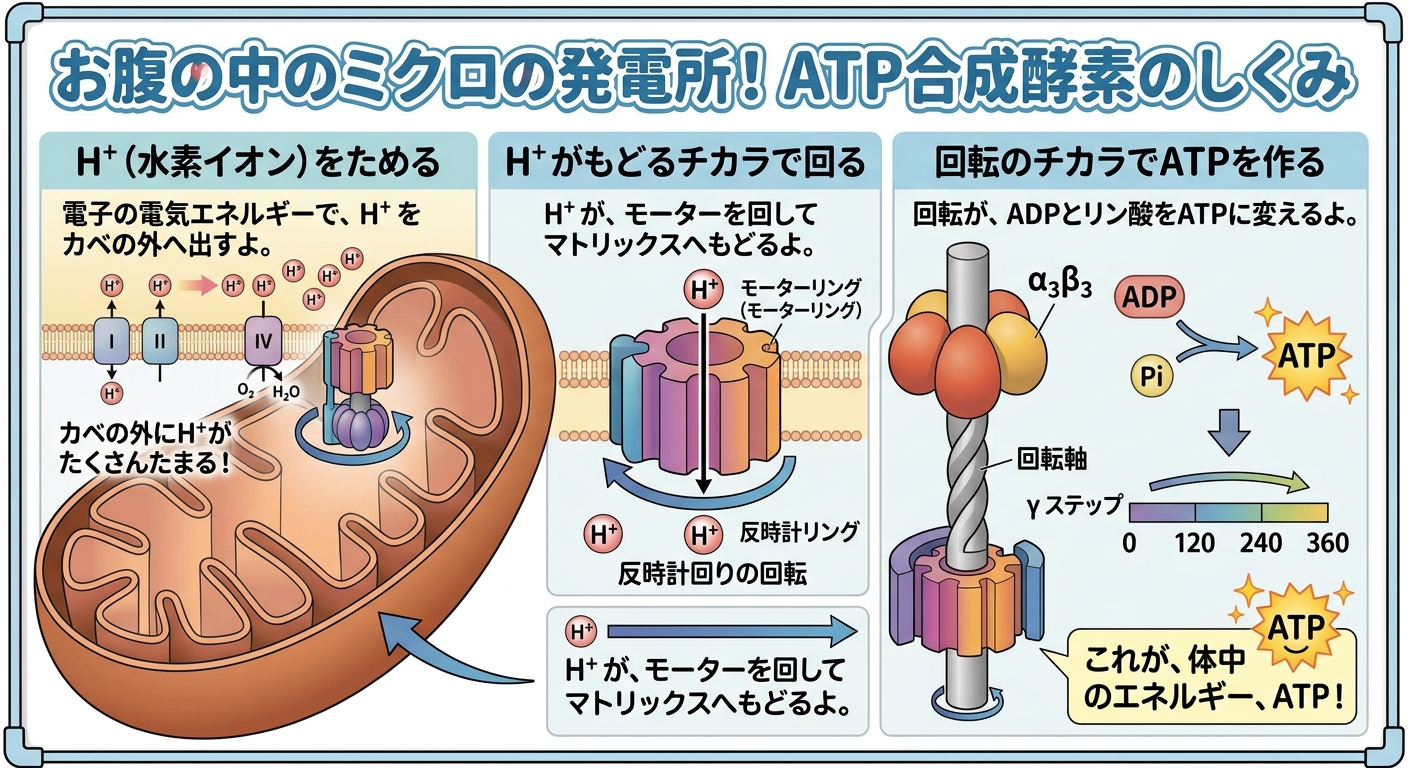
4. ATP合成酵素(F₀F₁-ATPase)による酸化性リン酸化:物理的な回転モーターによるATP生成
膜間腔に溜まった $\text{H}^+$ が、内膜を貫通する**ATP合成酵素($\text{F}_0\text{F}_1\text{–ATPase}$)**のチャネルを通ってマトリックス側へ逆流(落下)します。このプロトン駆動力を回転運動エネルギーへ変換し、$\text{ADP} + \text{P}_i \rightarrow \text{ATP}$ の化学結合(再合成)を圧倒的な効率で駆動します
※ATPase:ATPあーぜ
ATP合成酵素$\text{F}_\text{O}\text{F}_\text{1}$のcサブユニットは、生体膜(ミトコンドリア内膜やバクテリアの細胞膜など)に埋め込まれ、水素イオン(プロトン)の流入を受けてリング状に回転する膜タンパク質です。
- 回転のメカニズム(なぜ回るのか):
プロトン(水素イオン)が濃度の高い方から低い方へ移動する勢いを利用して、水車のように回ります。 - cリングの構造:
膜の中に「cサブユニット」が円状に並んだリング(cリング)があります。 - プロトンの結合:プロトンは専用の通り道から入り、cリングの特定の場所に結合します。
- 回転の原動力:プロトンが結合すると、その部分は膜の脂質(油)に馴染みやすくなり、回転できるようになります。
- 一方通行の動き:濃度勾配があるため、プロトンは必ず一方向にしか通り抜けられず、逆回転を防ぎます。
ミトコンドリアマトリックスとは、ミトコンドリアの内膜に囲まれた最も内側の内部空間(基質)のことです。


コメント